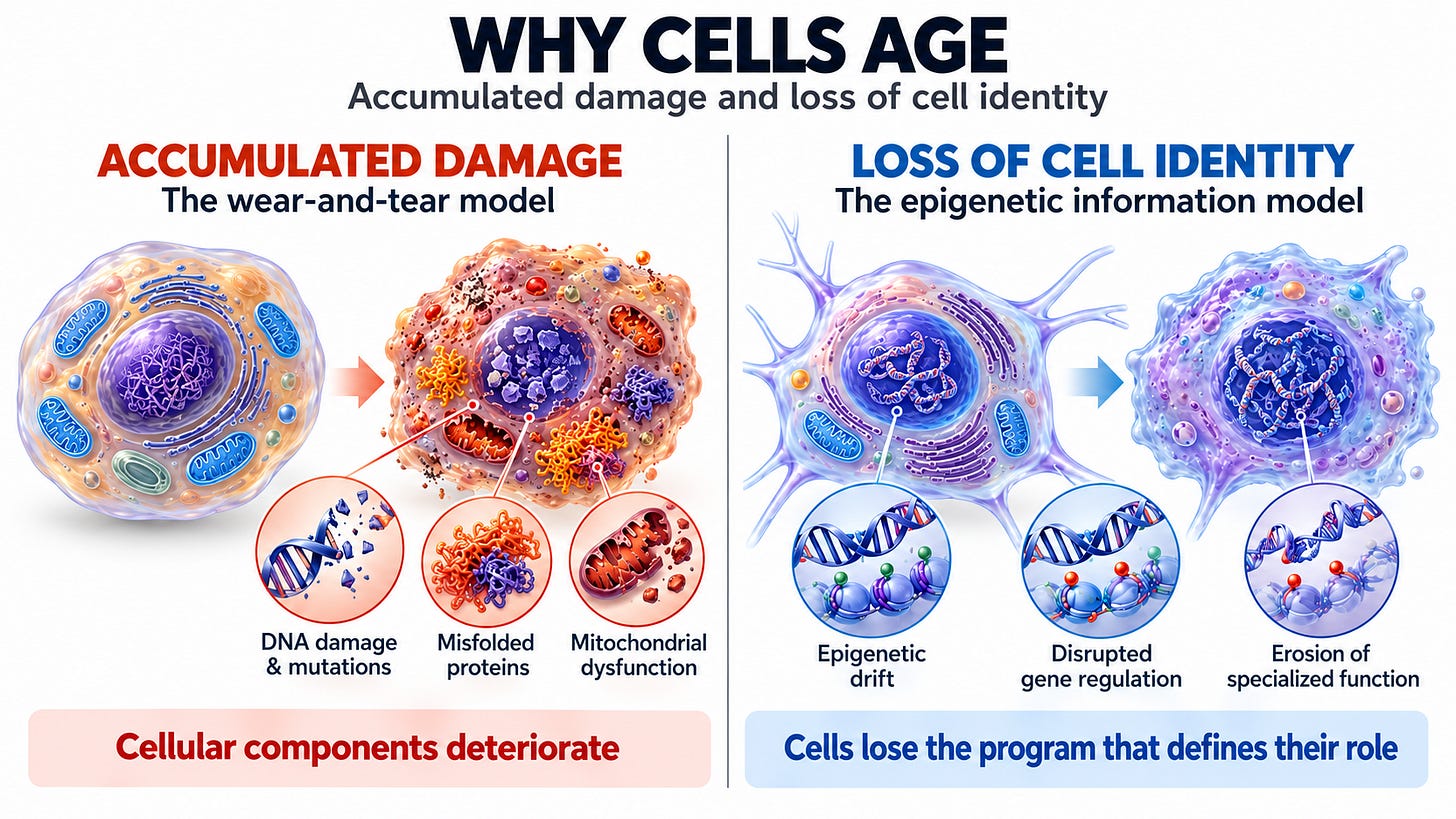
数十年にわたり、細胞老化の主要な説明は『摩耗と損耗』—DNA変異、酸化ストレス、分子レベルの損傷が蓄積して細胞が機能しなくなるという考え—であった。しかし、2026年9月に発表された2本の論文、ハーバード大学のVadim GladyshevグループによるNature掲載論文と、Altos LabsのJuan Carlos Izpisua BelmonteチームによるCell掲載論文は、補完的なモデルを提示する: 老化はその大部分において、細胞アイデンティティそのものの喪失によって駆動される。
このモデルでは、体内のすべての細胞が同一のゲノムを持つが、そのアイデンティティ—ニューロン、肝細胞、心筋細胞など—は、核内の三次元的なエピゲノム構造によって確立され、維持される。この構造にはDNAメチル化、ヒストン修飾、ヌクレオソームの位置決め、クロマチン構造が含まれる。これらは総じて、Eric Topolが自身のGround Truthsニュースレターでこれらの研究を報告する際に呼んだ『三層制御の文法』を形成し、各細胞タイプをその指定された役割に固定している。
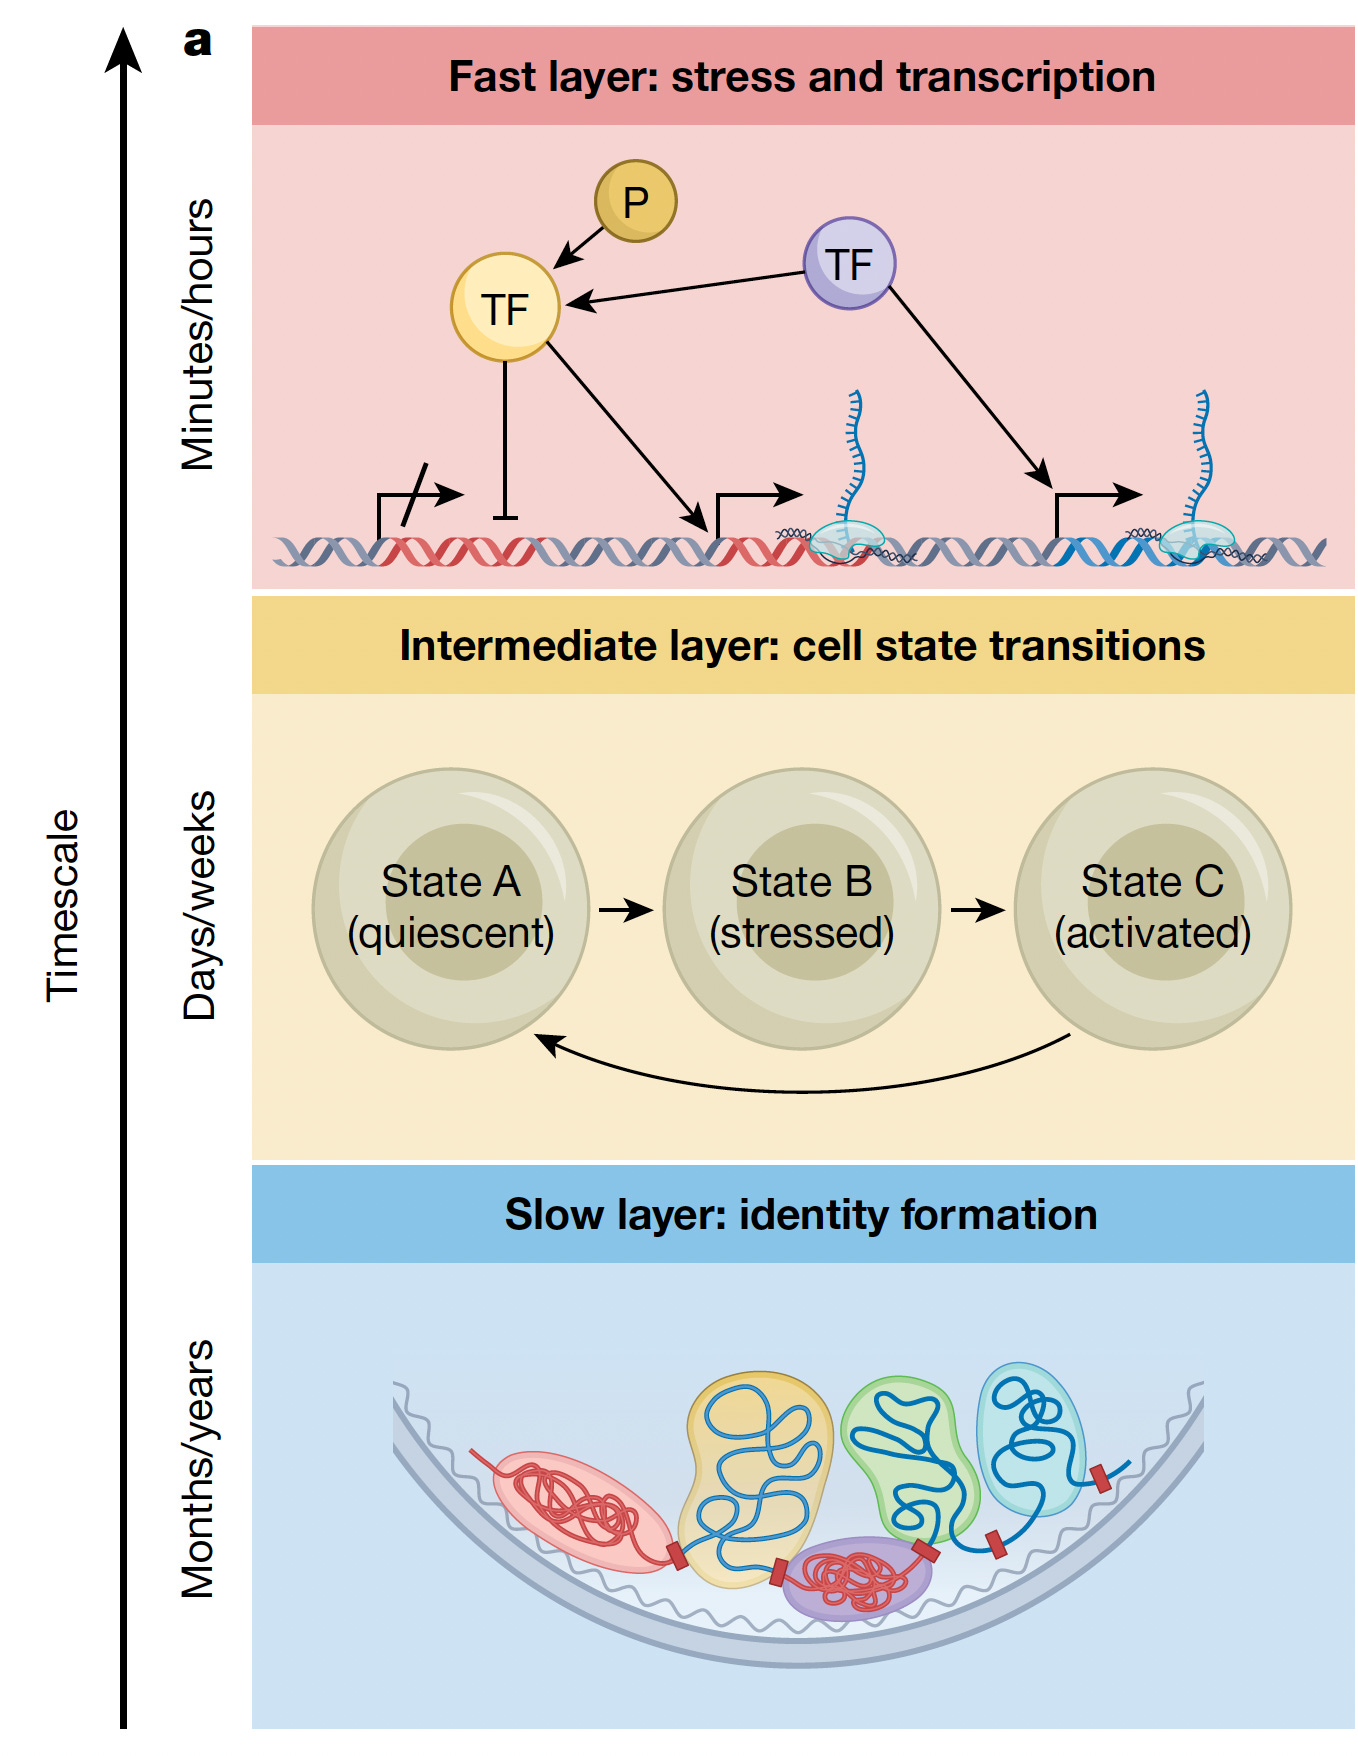
速い層は数分〜数時間で急性ストレスに応答し、AP-1のような転写因子を展開する。中間層は数日〜数週間かけて細胞状態の遷移を管理し、傷の治癒のために細胞を活性化してから基線に戻すといった役割を果たす。遅い層が決定的に重要だ: これは生涯にわたって細胞アイデンティティを絶縁する硬い境界を確立する。この遅い層はクロマチン構造に依存し、その浸食こそが新たな論文が老化と結びつけている現象である。
第3段落の後、速い層、中間層、遅い層を説明した後に配置;主要情報源からのこのリード図が、記事で説明される三層制御文法の説明を支える
概念的枠組みはConrad Waddingtonの1957年の『エピゲノム景観』という比喩に基づく。丘陵の谷をボールが転がり落ちる様子を想像してほしい: 谷は分化した細胞タイプを表し、その急峻な壁と深い盆地が安定性を提供する—これは発生生物学者がカナリゼーション(運河化)と呼ぶものだ。加齢とともに谷は傾斜を失い、盆地は浅くなる。このプロセスはディカナリゼーション(脱運河化)と呼ばれる。細胞は不安定になり、割り当てられたアイデンティティから逸脱し始める。
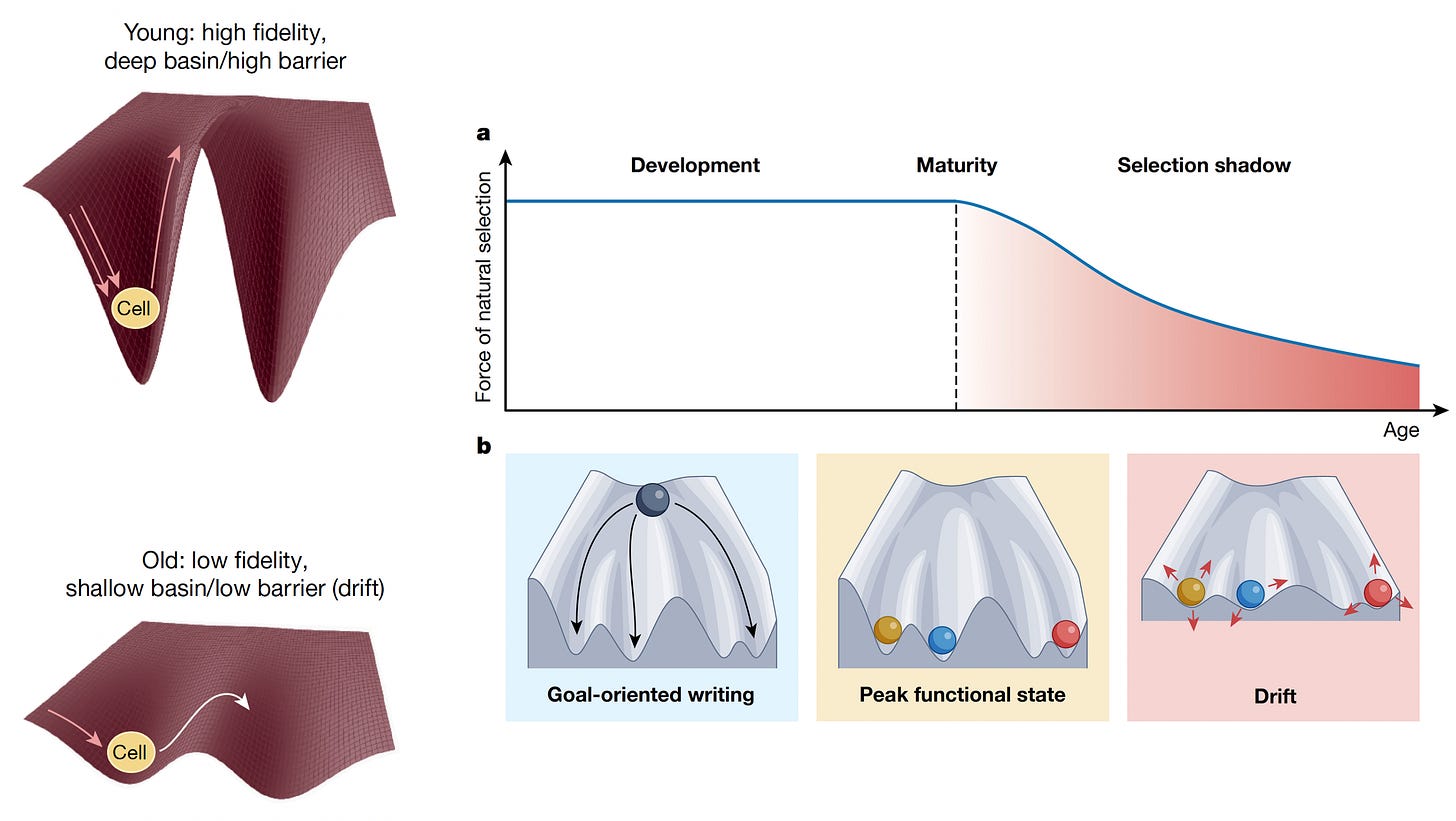
第4段落の後、Waddington景観比喩を導入し、加齢が谷の壁を浸食し盆地を浅くして細胞が割り当てられたアイデンティティから逸脱することを説明した後に配置
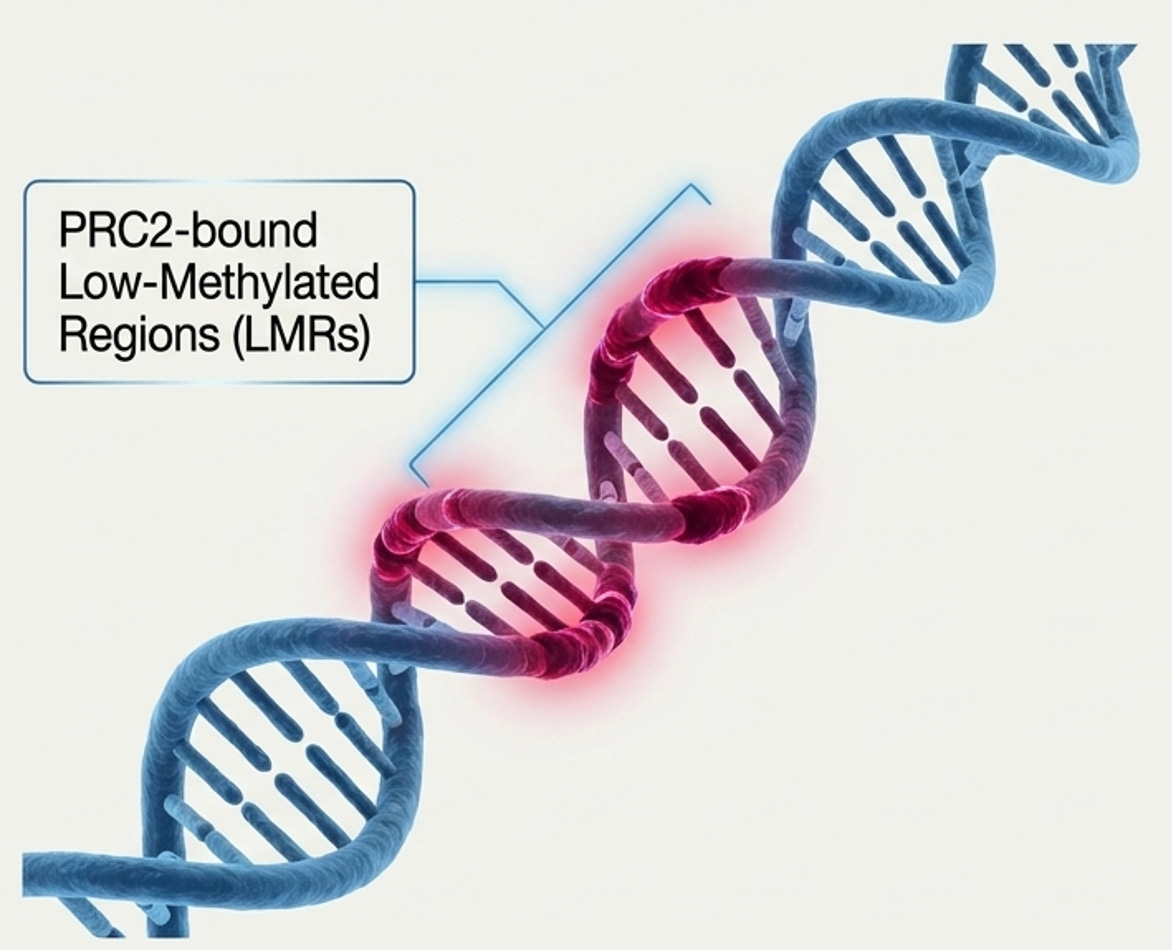
Nature論文によれば、この景観の分子的『彫刻家』はPolycomb抑制複合体2(PRC2)である。PRC2は深いエピゲノム制約—硬い境界—を確立し、ニューロンをニューロンとして、肝細胞を肝細胞として維持する。驚くべきことに、論文はエピゲノム時計—348哺乳類種において寿命を予測するDNAメチル化パターンに基づくバイオマーカー—がPRC2の低メチル化領域の浸食速度を測定していると報告する。言い換えれば、時計は遅い層の崩壊を追跡しているのだ。
慢性炎症が主要な促進因子として浮上する。持続的な炎症シグナルが速い層の応答能力を圧倒すると、PRC2機能を阻害し、Waddington景観の浸食を加速させる。炎症が治まっても、クロマチン内のエピゲノム変化が持続し、損傷が固定化されることがある。このエピゲノム文法の喪失は、がんの温床にもなり得る。
Cell論文はこのドリフトの行き先を詳述する: 間葉系の、線維芽細胞様の状態だ。46組織タイプにわたる細胞がこの状態を取ることが示され、細胞外マトリックス—Topolの言葉を借りれば『柔らかいパテ』—を沈着させ、線維化と慢性炎症を駆動する。この間葉系ドリフトは、動脈硬化、加齢黄斑変性、アルツハイマー病、その他の加齢関連疾患に関与している。正のフィードバックループが問題を複雑化する: 活性化した線維芽細胞がさらに多くの線維芽細胞をリクルートし、瘢痕形成を増幅させるのだ。
第7段落の後、Cell論文で説明されるドリフトの行き先;この図が46組織タイプにわたる細胞が線維芽細胞様状態を取る説明を支え、動脈硬化、黄斑変性、アルツハイマー病と関連付けられている
アイデンティティの喪失が老化を駆動するなら、このプロセスを止めたり逆転させたりできるのか。論文とTopolの総説は3つの道筋を強調する:
カロリー制限はアセチルCoAレベルとPRC2メチル化を低下させ、概念的には遅い層の構造を維持することで『ドリフトを凍結』する。多くの哺乳類で寿命を延ばすが、非ヒト霊長類での結果は一貫しておらず、ヒトに必要とされる制限の程度と期間は現実的でないと考えられる。
部分的エピゲノムリプログラミングは、4つのYamanaka因子—OSKM(Oct-4、Sox2、Klf4、c-Myc)—への短時間曝露を用いて、細胞アイデンティティを消去して多能性に逆戻りさせることなく(これは発がんリスクを伴う)、細胞を若返らせる。短いバーストが、96歳ドナー由来のものを含む加齢ヒト線維芽細胞や動物モデルにおいて細胞アイデンティティを回復し、PRC2ドメインを再確立し、間葉系ドリフトを積極的に逆転させた。代替アプローチでは3因子のみ(発がん性のc-Mycを除いたOSK)を使用し、重度の視神経損傷に対する直接眼球注射によるパイロット研究で試験されている。
第10段落の後、3つの介入アプローチを扱った後に配置;この図が部分的リプログラミングの議論を支え、OSKMが96歳ドナー由来を含む加齢線維芽細胞のアイデンティティを回復し、OSKのみが視神経損傷のパイロット試験で試されていることを示す
Nature論文が指摘するように、リチウムは遅い層の不全経路に干渉することで—具体的にはGSK3β阻害によって、実験モデルにおけるタウリン酸化をブロックすることで—ニューロンアイデンティティを保持する可能性がある。リチウムオロテートは以前からアルツハイマー病予防薬として提案されており、この機制がその効果の基盤かもしれない。
Topolは、部分的リプログラミングやその他の介入が、全身、臓器、組織レベルでヒトの老化を安全に逆転できるかどうかは不確実なままだと強調する。速い層への慢性ストレスと遅い層の浸食の間のフィードバックループは、ライフスタイル要因—炎症促進食、座りがちな行動、不十分な睡眠—が慢性ストレッサーとして作用し、アイデンティティ喪失を加速することを示唆している。
いくつかの疑問は未解決のままである。論文はなぜ異なる種がまったく異なる速度で老化するのか(例: イヌ対ヒト)、あるいはモデルが細胞分裂のHayflick限界をどう説明するかには触れていない。概日リズム—より短期的なシグナルを統合する日単位の振動であり、老化に影響することが知られている—は、三時間スケール枠組みから欠落している。そして胚発生がほぼ完全なエピゲノムリセットが可能であることを示している(父方ゲノムは加齢関連タグを剥ぎ取られ、ミトコンドリアは置換され、テロメアは再構築され、損傷タンパク質は除去されるが、精子由来のDNA変異は残存する)ものの、その自然なリプログラミングを成人の安全な治療戦略に翻訳するのは遠い展望である。生体内での特定ゲノム部位への標的メチル化または脱メチル化は現在のところ実現不可能だ。
これら2つの研究がPRC2とWaddington景観で収斂することは、エピゲノム時計がこれまで測定してきたものの機序的説明を提供する。老化を単なる損傷の蓄積ではなく、細胞を定義するエピゲノム制約の進行性喪失として再定義する。この洞察がヒト老化に対する安全かつ効果的な介入を生むかどうかが、次の重要な問いである。