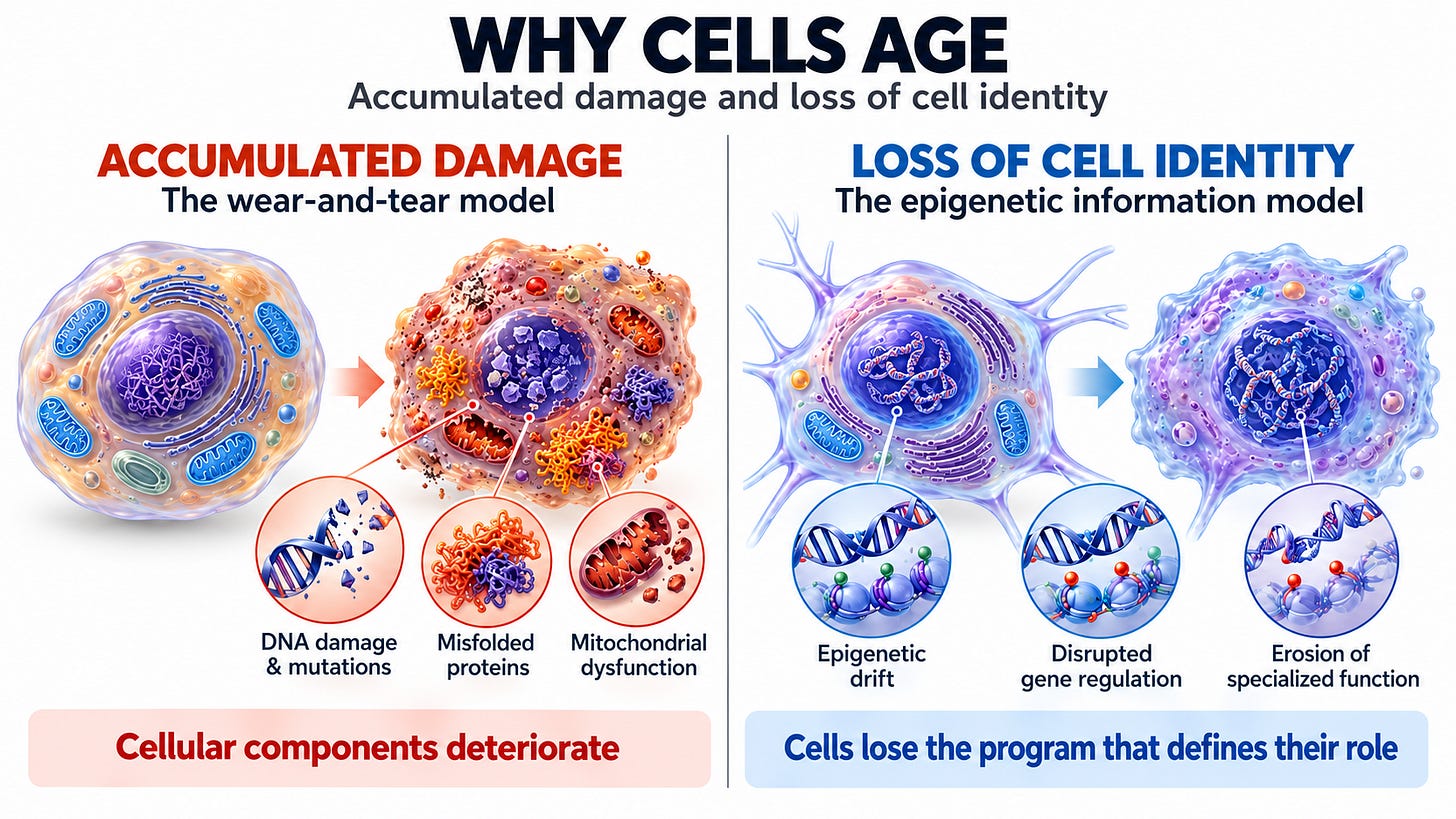
几十年来,细胞衰老的占主导地位的解释一直是“磨损”——即DNA突变、氧化应压和分子损伤不断累积,直到细胞停止工作。然而,2026年9月发表的两篇论文,一篇是哈佛大学Vadim Gladyshev小组发表在《Nature》上的,另一篇是Altos Labs的Juan Carlos Izpisua Belmonte团队发表在《Cell》上的,提出了一个互补的模型:衰老在很大程度上是由细胞身份本身的丧失驱动的。
在这个模型中,身体里的每个细胞都携带相同的基因组,但其身份——无论是神经元、肝细胞还是心肌细胞——是由细胞核内三维表观遗传结构建立并维持的。这种结构包括DNA甲基化、组蛋白修饰、核小体定位和染色质结构。正如Eric Topol在《Ground Truths》简报中报道这些研究时所称的,它们共同构成了“三层调节语法”,将每种细胞类型锁定在其指定的角色中。
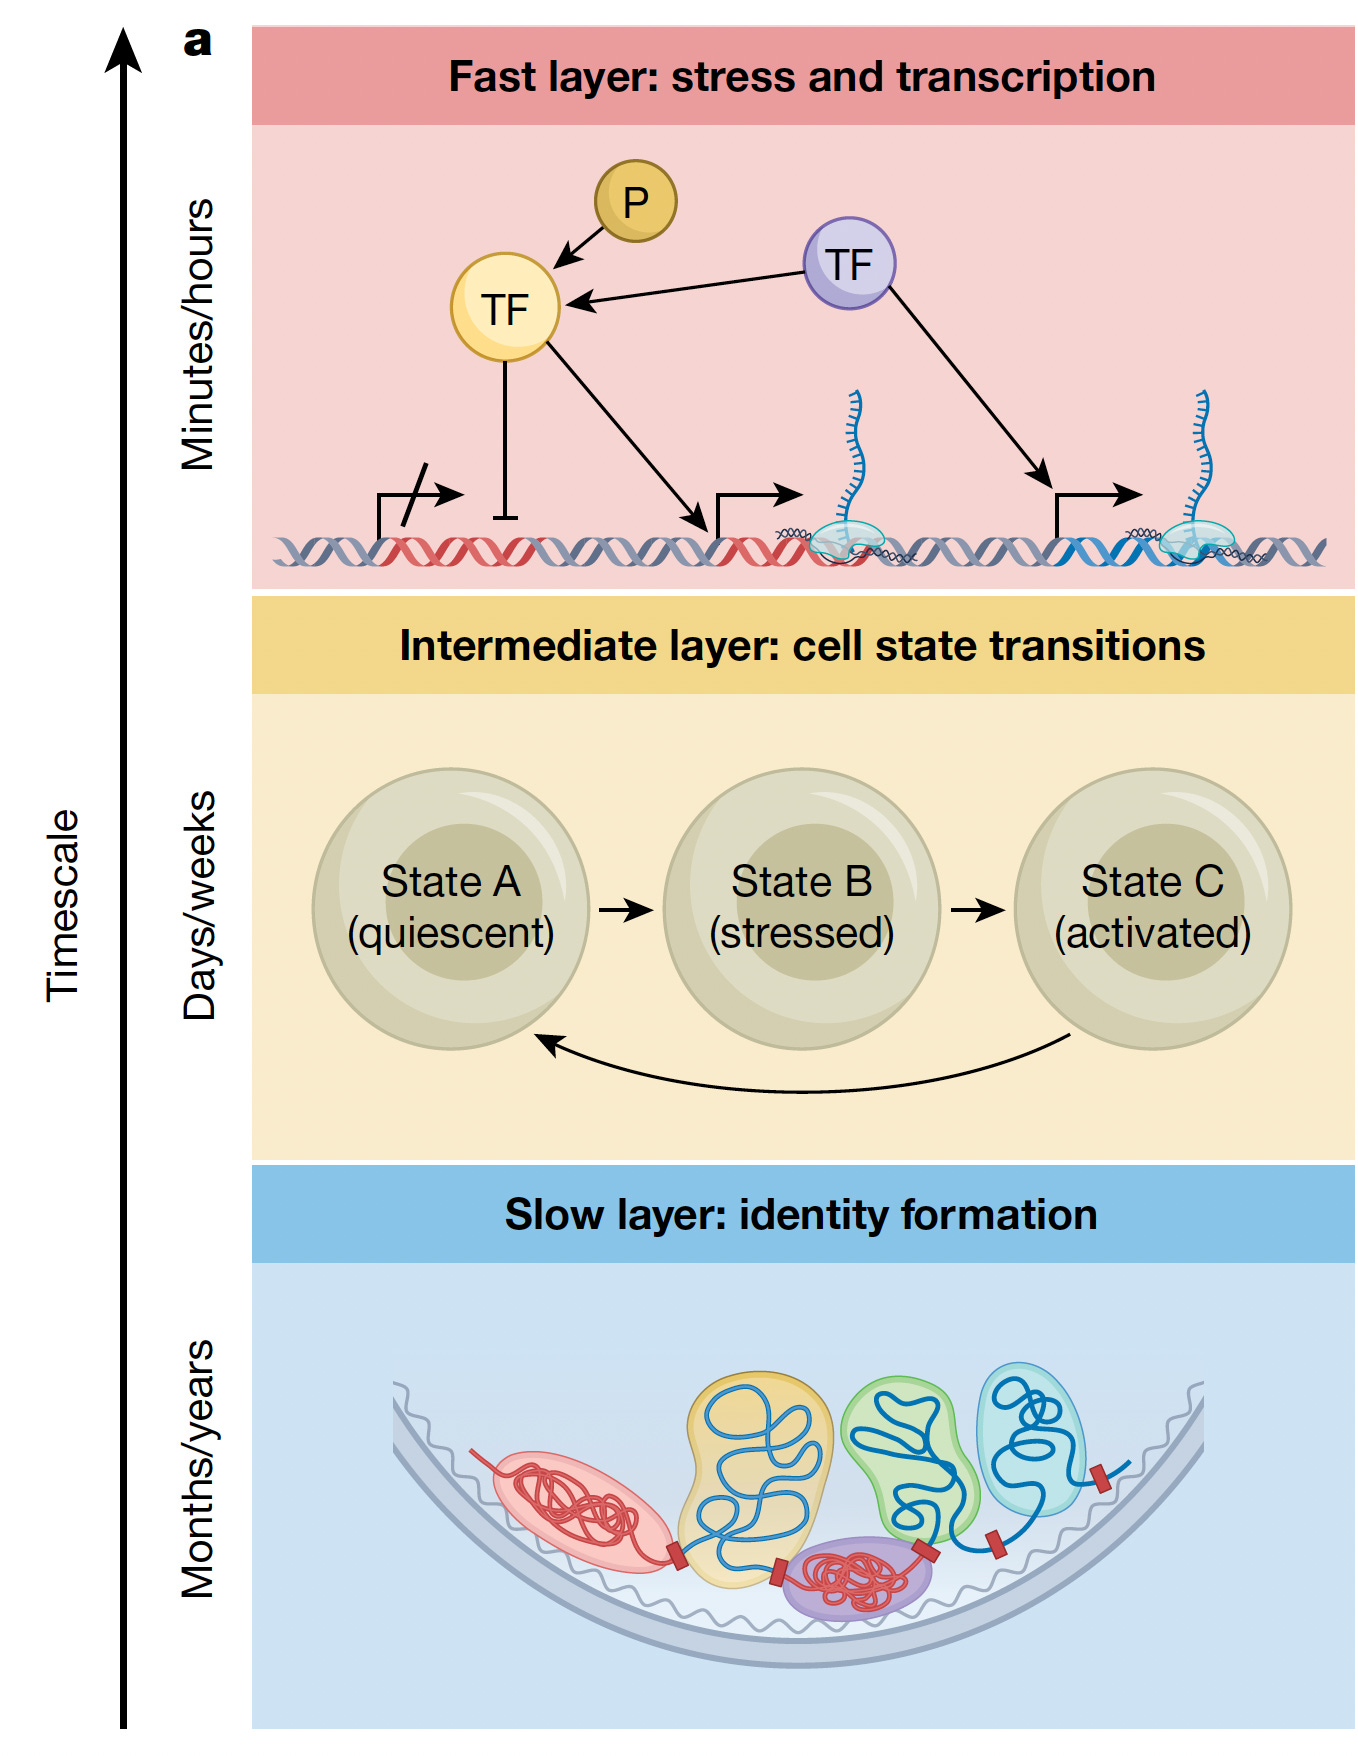
快速层在几分钟到几小时内对急性压力做出反应,部署如AP-1之类的转录因子。中间层负责管理持续数天到数周的细胞状态转变,例如激活细胞用于伤口愈合,然后将其恢复到基准状态。慢层是关键的一层:它建立了在整个生命周期中隔离细胞身份的硬边界。这一慢层依赖于染色质结构,而新论文将这种结构的侵蚀与衰老联系起来。
置于解释快速、中间和慢层的第3段之后;此主要来源的领先图示锚定了文章中描述的三层调节语法解释
这一概念框架借鉴了Conrad Waddington 1957年的“表观遗传景观”比喻。想象一个球滚入山谷:山谷代表分化的细胞类型,其陡峭的墙壁和深邃的盆地提供了稳定性——发育生物学家称之为“渠化”(canalization)。随着年龄增长,山谷失去坡度,盆地变得浅平,这一过程被称为“去渠化”(decanalization)。细胞变得不稳定,并开始偏离其指定的身份。
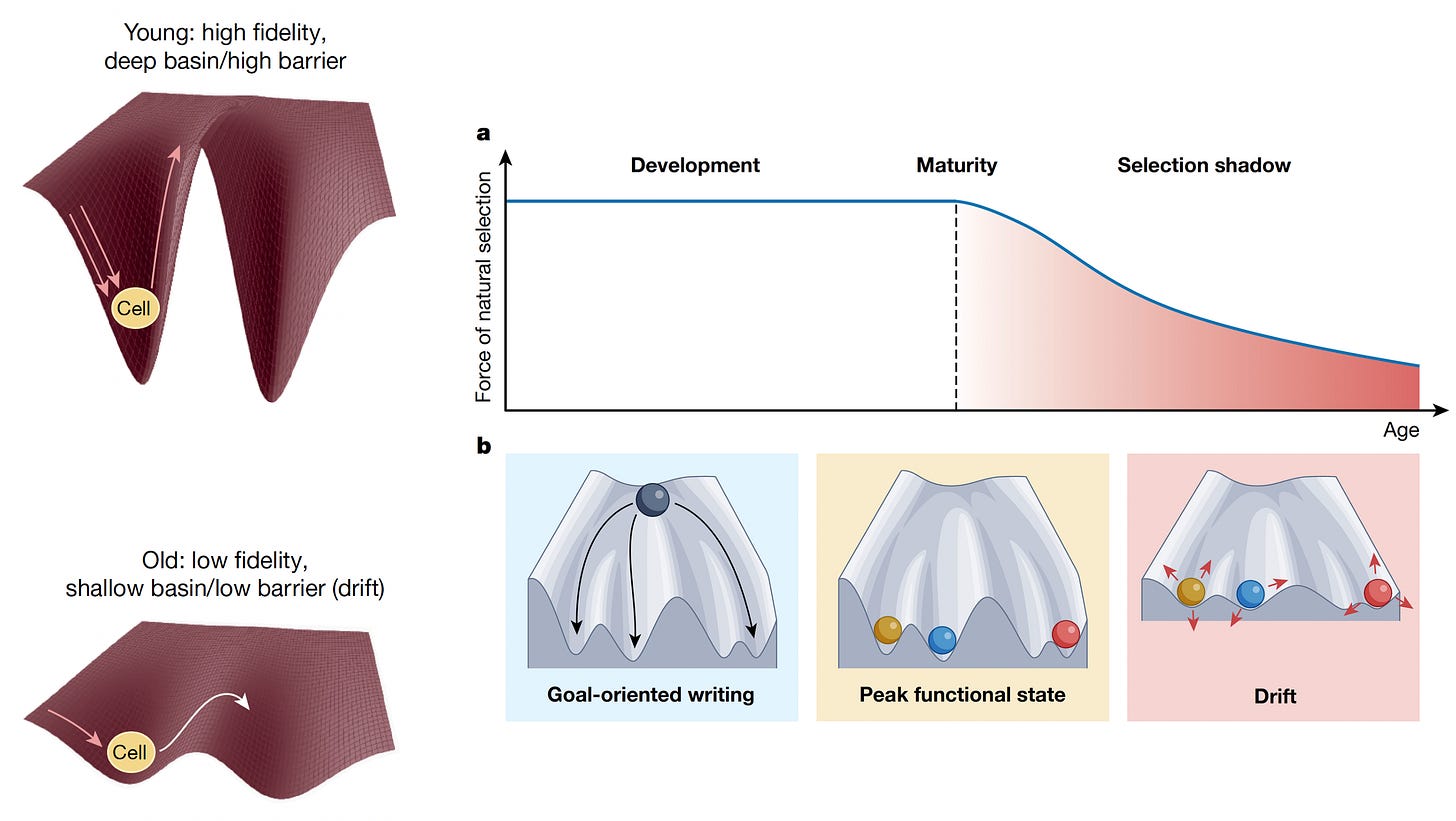
置于引入Waddington景观比喻并解释衰老如何侵蚀山谷墙壁和变浅盆地、导致细胞偏离指定身份的第4段之后
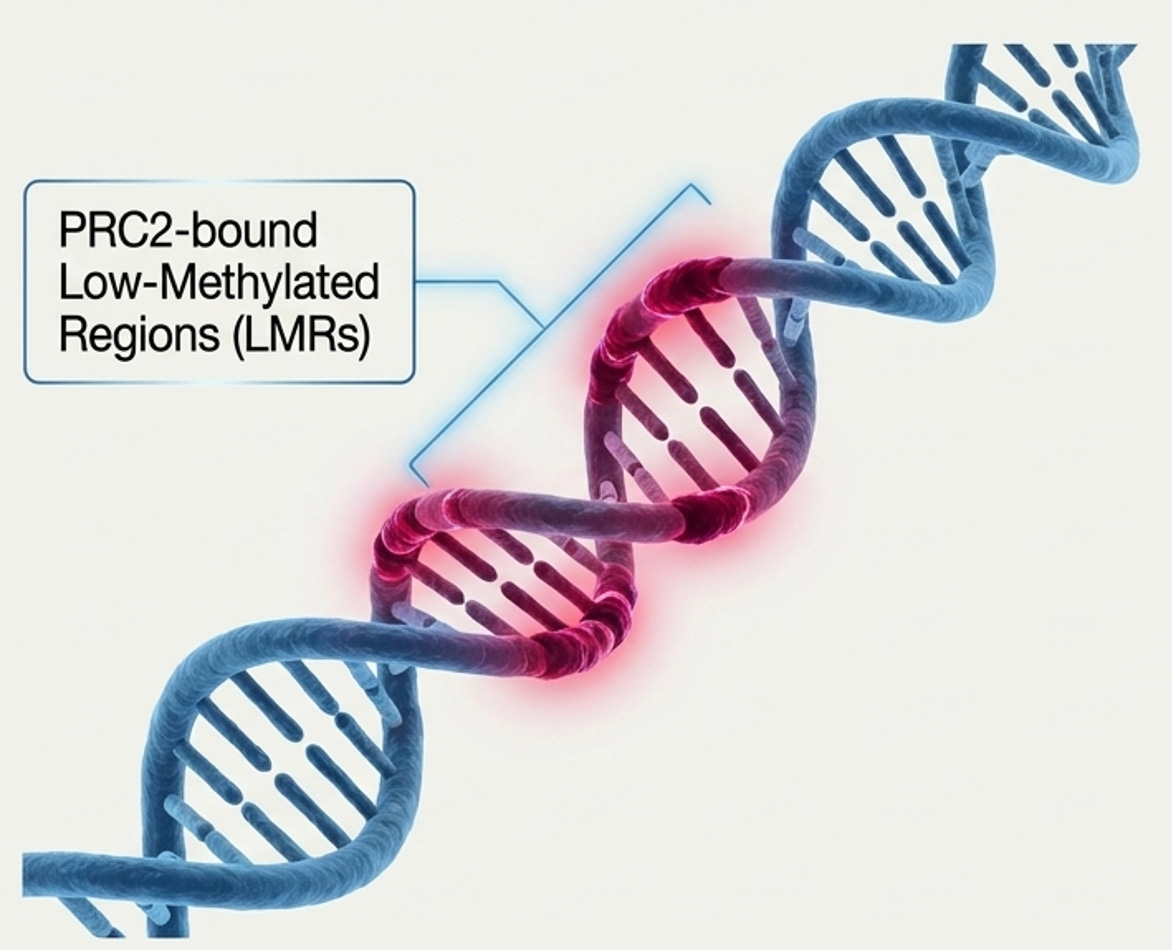
根据《Nature》论文,这一景观的分子“雕刻师”是Polycomb抑制复合物2(PRC2)。PRC2建立深层的表观遗传约束——即保持神经元仍是神经元、肝细胞仍是肝细胞的硬边界。令人惊讶的是,论文报告称表观遗传钟——基于预测348种哺乳动物寿命的DNA甲基化模式的生物标志物——正在测量PRC2低甲基化区域侵蚀的速度。换句话说,这些时钟追踪的是慢层的衰变。
慢性炎症作为关键的加速因素出现。当持续的炎症信号压倒快速层的反应能力时,它们会阻碍PRC2的功能,加速Waddington景观的侵蚀。即使炎症消退后,染色质中的表观遗传变化仍可能持续存在,锁定损伤。这种表观遗传语法的丧失也可能为癌症创造温床。
《Cell》论文详细描述了这种漂移的去向:一种间充质、类成纤维细胞的状态。研究显示,46种组织类型的细胞都表现出这种状态,并沉积细胞外基质——用Topol的话说就是“黏糊糊的腻子”——驱动纤维化和慢性炎症。这种间充质漂移与动脉粥样硬化、年龄相关性黄斑变性、阿尔茨海默病和其他年龄相关疾病有关。一个正反馈循环加剧了问题:激活的成纤维细胞招募更多成纤维细胞,放大瘢痕形成。
置于《Cell》论文描述的漂移去向的第7段之后;该图示锚定了46种组织类型的细胞采用类成纤维细胞状态的描述,并与动脉粥样硬化、黄斑变性和阿尔茨海默病相关联
如果身份的丧失驱动了衰老,那么这一过程能否被阻止或逆转?论文和Topol的综合分析强调了三个途径:
热量限制降低了乙酰辅酶A水平和PRC2甲基化,从概念上通过保留慢层结构来“冻结漂移”。它延长了许多哺乳动物的寿命,但在非人类灵长类动物中的结果并不一致,且人类所需的限制程度和持续时间可能并不切实际。
部分表观遗传重编程利用短暂暴露于四个Yamanaka因子——OSKM(Oct-4, Sox2, Klf4, c-Myc)——来使细胞年轻化,而不会抹除它们的身份并将其还原为多能性(这带有癌症风险)。短时间的脉冲已在包括96岁捐赠者在内的老年人类成纤维细胞以及动物模型中恢复了细胞身份,重新建立了PRC2结构域并主动逆转了间充质漂移。另一种方法仅使用三个因子(OSK,省略致癌的c-Myc),目前正在一项针对严重视神经损伤的初步研究中通过直接眼部注射进行测试。
置于涵盖三种干预途径的第10段之后;该图示锚定了部分重编程的讨论,其中OSKM在包括96岁捐赠者的衰老成纤维细胞中恢复身份,且仅用OSK在视神经损伤初步研究中进行测试
《Nature》论文指出,锂可以通过干扰慢层失效路径来保留神经元身份——具体是通过GSK3β抑制,这在实验模型中阻断了tau蛋白磷酸化。锂乳酸盐此前已被提议作为阿尔茨海默病的预防手段,这种机制可能正是其效果的底层原理。
Topol强调,无论是部分重编程还是其他干预措施,是否能在人类全身、器官或组织水平上安全地逆转衰老仍是不确定的。快速层上的慢性压力与慢层侵蚀之间的反馈循环表明,生活方式因素——促炎饮食、久坐行为、睡眠不足——充当慢性压力源,加速身份的丧失。
仍有几个问题悬而未决。论文并未解释为什么不同物种的衰老速度差异巨大(例如狗与人类),或者该模型如何解释细胞分裂的Hayflick极限。昼夜节律——一种整合短期信号且已知影响衰老的每日振荡——在三时标框架中缺失。虽然胚胎发育证明了近乎完全的表观遗传重置是可能的(父本基因组被剥离了与年龄相关的标记,线粒体被更换,端粒重建,受损蛋白清除,尽管精子获得的DNA突变依然存在),但将这种自然重编程转化为成人的安全治疗策略仍是一个遥远的愿景。在体内特定基因位点进行定向甲基化或去甲基化目前尚不可行。
这两项研究在PRC2和Waddington景观上的汇合,为表观遗传钟一直测量的现象提供了机制解释。它将衰老重新定义为不仅仅是累积的损伤,而是定义细胞身份的表观遗传约束的逐渐丧失。这一见解是否能为人类衰老提供安全有效的干预措施,是接下来的关键问题。}] ,